Proteinler etiketine sahip kayıtlar gösteriliyor. Tüm kayıtları göster
12 Mart 2015 Perşembe
Protein Mühendisliği Uygulamaları
09:11
Aminoasitler, Biyokimya Laboratuvarı, Biyokimya Lisans, Biyosensörler, Proteinler, Sağlık
No comments
Fersht ve
ark. İndole-3-glycerol phosphate synthase(IGPS) ‘den yola çıkarak
phosphoribosylanthranylate isomerase(PRAI) elde etmişlerdir. Yönlendirilmiş
evrimin bu çarpıcı uygulaması aynı zamanda enzim evriminde ‘conserved scaffold’
hipotezinin de test edilmesini sağlamıştır.
Reetz ve ark. Pseudomonas aeruginosa’dan elde edilen bir lipazın 2-metildekanoata enantio
seçiciliğini yönlendirilmiş evrim tekniğini kullanarak artırmayı
başarmışlardır. Mutant kütüphanesinin taranmasında saf(R)- ya da (S)-p-nitrofenil ester kullanmışlardır.
Mutant enzimde aktif merkez dışındaki beş a.asidin yer değiştirdiği ve böylece
aktif merkez dışındaki loopların flexibilitesinin enantioseçiciliğe katkıda
bulunduğu anlaşılmıştır.
Bir enzimin
termal stabilitesindeki artışa aktivite kaybının eşlik edeceği yönündeki yaygın
kanıya rağmen, psycrophilic subtilisin proteazının termal stabilitesi 60 C ye
çıkarılmış ve 10 C deki aktivitesi de korunmuştur. Bu çalışmada psycrophilic ve
mesophilic enzimler arasındaki %30-80 lik amino asit farklılığına karşın mutant
enzimin sadece 7 amino asit değişimi içerdiği görülmüştür.(Miyazaki ve ark
2000) Maxygen(USA) ve
Novo Nordisk(Danimarka) araştırmacıları eşzamanlı olarak family-shuffled subtilisin
kütüphanesinde dört parametre taramış-
23 C de aktivite, termal stabilite, organik çözgen toleransı ve pH profili- herbir parametre için dikkate değer iyileşmeler gözlemlemişlerdir. Rasyonel protein
dizaynına ilişkin örnekler ise ;
-alfa amilazın
termal stabilitesini artırmak için asparagin artıklarının uzaklaştırılması,
rijid karaktere sahip prolin artığının eklenmesi ,
- Lizozimin termal
stabilitesini artrmak için disülfid köprülerinin eklenmesi,
-3-izopropil malat
dehidrogenazın termal stabilitesini artırmak için hidrofobik çekirdeğin güçlendirilmesi,
- Format
dehidrogenazın oksidasyon stabilitesini artırmak için Met ve Cys artıklarının
uzaklaştırılması ise olumlu sonuçlar vermiştir.
HEMATOPOETİK KÖK HÜCE KAYNAKLARI NELERDİR ?
09:09
Aminoasitler, Biyokimya, Biyokimya Laboratuvarı, Biyosensörler, DNA ve RNA, Karbohidratlar, Proteinler, Sağlık, Tıp
No comments
Kemik
İliği: Kök hücrelerin klasik kaynağı kemik iliğidir. 40
yıldır doktorlar kemik iliğinden, donorden anestezi
altında genelde kalça kemiğinden iğne yardımı ile kemik iliği hücreleri elde
etmektedirler. Bu hücrelerin her 100.000 de biri uzun vadede kan elemanlarını
oluşturan kök hücrelerdir, diğerleri stromal hücreler, stromal kök
hücreler, kan progenitor hücreleri, ve matür beyaz ve
kırmızı hücrelerdir.
Periferik Kan: Son zamanlarda hekimler klinik transplantasyon için
kök hücreleri dolaşımdaki kandan elde etmeyi tercih ediyorlar. Yıllardır
dolaşımdaki kök hücre ve öncü hücre sayısı az olarak bilinirdi, fakat son 10
yılda bilim adamları kök hücrelerin kemik iliğinden dolaşıma geçmesini sağlayan
granülasit stimule edici faktör gibi sitokinler yardımı ile
bu sayıyı arttırdılar.Bu işlem için donöre kök
hücreler elde edilmeden birkaç gün önce GCSF enjekte edilir. Hücreleri toplamak
için donörün venine bir tüp takılır,kan CD34+ hücrelerini çeken bir bir filtrenin
içinden geçirilir ve kırmızı hücreler tekrar hastaya verilir.
Umblikal Kord Kanı: 1980’lerin
sonu ve 1990’ların başında bilim adamları insan umblikal kordon kanı
ve plasentanın hemotopoetik kök hücreler açısından
zengin bir kaynak olduğunu fark ettiler. Bu doku (plasenta) gebelik boyunca
gelişmekte olan fetusu besler, bebekle birlikte doğar ve çöpe atılır idi. Fankoni anemili bir
çocuğa yapılan başarılı bir kordon kanı transplantasyonundan sonra bu
hücrelerin toplanması ve tedavide kullanımı arttı. Bugün kordon kanının
çoğaltılması ve kemik iliği kök hücreleri ile arasındaki farklar ve
kıyaslamalarla ilgili pek çok çalışma yürütülmektedir.Bugün kordon kanı
kök hücrelerinin multiple germ tabakası hücrelerine (multipotent), hatta
endoderm, ekdoderm, ve mesoderm gibi tüm germ tabakası hücrelerine (pluripotent)
dönüşebileceği iddia edilmektedir.
4 Mart 2015 Çarşamba
Cumhuriyet Üniversitesinde Mesleki Dünya Standartları Semineri
10:58
Aminoasitler, Biyokimya, Biyokimya Haberleri, Biyokimya Lisans Tezleri, Karbohidratlar, Proteinler, Tıp
No comments

★FEN FAKÜLTESİ ÖĞRENCİ TEMSİLCİLİĞİ★
YER : Fen Fakültesi Erfüz Edgüer Konferans Salonu
SAAT : 13:00
KATILIM : ****ÜCRETSİZ***
/////SEMİNERE KATILAN TÜM KATILIMCILAR TSC AKADEMİ'NİN YAPACAĞI EĞİTİM PROGRAMLARINDAN 25 TL'LİK İNDİRİM KAZANACAKTIR.////
KİMLER KATILMALI : TÜM SAĞLIK/GIDA/İLAÇ/ÇEVRE SEKTÖRÜ ÇALIŞANLARI ÖĞRENCİ VEYA MEZUNLARI
HANGİ BÖLÜMLER GELMELİ ? ;
*BİYOLOJİ BÖLÜMÜ
*BİYOKİMYA BÖLÜMÜ
*KİMYA BÖLÜMÜ
*MOLEKÜLER BİYOLOJİ VE GENETİK BÖLÜMÜ
*VETERİNERLİK BÖLÜMÜ
*ÇEVRE MÜHENDİSLİĞİ BÖLÜMÜ
*GIDA MÜHENDİSLİĞİ BÖLÜMÜ
*VE SAĞLIK,İLAÇ,MEDİKAL SEKTÖRDE CALISMAK İSTEYEN TÜM ÖĞRENCİ VE MEZUNLAR
SEMİNER KONULARI ;
*DÜNYA STANDARTLARI NEDİR ?
*MESLEĞİNİZE EN UYGUN DÜNYA STANDARTLARI NELERDİR ?
*EĞİTİMLERİN ÖNEMİ
*İŞLEYİŞ
*İŞ İLANLARINDA AVANTAJLARI
*MESLEKİ YETKİNLİK
*KARİYER ALANLARI VE FIRSATLARI
*BİLİNMEYEN ÇALIŞMA ALANLARI
TSC AKADEMİ EĞİTİM KORDİNATÖRÜ ;
UZMAN BİYOLOG,GÖKHAN BÜYÜKPOLAT
27 Aralık 2014 Cumartesi
Deri check-up'ı DNA'yı inceliyor
04:50
Biyokimya, Biyokimya Haberleri, Biyokimya Laboratuvarı, Biyokimya Lisans, Biyokimya Lisans Tezleri, Biyosensörler, Proteinler, Sağlık
No comments

Cilt sağlığını belirleyen en önemli etkenlerden bir tanesi cilt hücreleri içindeki DNA'lardır. Deri hem en büyük organımız olması nedeniyle hem de dışarıyla en fazla temasta olan organ olmasından dolayı bakıma en muhtaç bölümdür.
Plastik cerrah Dr. Dilek Avşar, cilt sağlığı ve yıpranmaların önüne erken geçebilmek için deri check up'ı denilen yöntemin uygulanabileceğini belirtiyor. Bu çalışmada DNA'da estetik açıdan etkili olan parametreler inceleniyor.
İLK OLARAK ELASTİKİYET AZALIYOR
Cilt yaşlanmaya başladığında sıkılığı ve elastikiyeti azalır ve ciltte sarkmalar başlar. İlk kategoride elastikiyeti ve sıkılığı sağlayan kollejen üreten genler incelenir.Kollejen yapımının azalması ve kollejenlerin yaşlanması elastikeyet kaybı ve sarkmayla sonuçlanır.Genetik yapı kollejen üretiminde ve kollejenin dayanıklılığında önmelidir.Bu kategorideki inceleme ile ciltteki erken kırışıklığın,sarkmanın önlemleri alınabilir.
CİLTTE ÇATLAMA GEVŞEKLİĞE BAKILIYOR
İkinci katogoride ise glikasyon durumu incelenir. Glikasyon, vucutta işlenmeden kalmış kalan fazla şekerin elastin ve kollejene bağlanmasıdır ki bu tüm vucudu yaşlılığa götüren en büyük etkendir. Ciltte oluşan glikasyonla ciltte çatlama, incelme, kendini onaramama, gevşeklik ve kızarıklık görülür.
GÜNEŞİN ZARARLI ETKİLERİ
Üçüncü kategoride güneşin zararlı etkileri ve pigmentasyon genleri incelenir. Yaşlanma ve lekenme durumu için önemli olan genler incelenerek bu yönde tedbir alınması sağlanır. Dördüncü kategori de ise vücutta hastalık yapan serbest radikallerin deriye ait genleri incelenerek; genetik olarak serbest radikallerle vucutta savaşan antioksidanların kabiliyetleri tespit edilir.Serbest radikaller;erken yaşlanma,deride mat görünüm,lekelenme ve sarkmalar yapar. Antioksidanlarda onları engllemeye yönelik çalışır.
HASSASİYET VE İLTİHAP YAPAN GENLER
Beşinci kategori ise deride hassasiyet ve inflamasyon yapan genler incelenir. Bu sayede ciltte iyileşmenin geçıkmesi,kızarıklık ve şişkinlik(ödem) gibi cildi yıpratıcı sorunlarla karşılaşılabilir. Toplam bu 5 kategorideki genler incelenerek kişinin bu bölümlerde zayıf ve güçlü olduğu yönler ortaya çıkarılır.Yapılacak tedaviler ve alınacak önlemlerle zayıf olan yönler desteklenmiş ve güçlü oldugu kısımlara da gereksiz yatırımlar yapılmamış olur. Doğru ve kişiye özgü yol haritası ile de kişinin cildindeki erken yaşlanma bulguları geciktirilir ve iyi yaş alması sağlanır.
22 Ekim 2014 Çarşamba
Protein Saflaştırmada Çöktürme Yöntemleri

1- pH Değişimi ile Çöktürme
Çözeltinin pH değerini proteinin izoelektrik noktasına (pI) yakın ya da eşit duruma getirmektir. Bu işleme izoelektrik çöktürme denir. İzoelektrik noktada protein yüzeyindeki negatif ve pozitif yükler birbirlerine eşit olacaklardır ve benzer moleküller arasında artık elektrostatik itmeler oluşmayacaktır. Bu moleküller arasında belki elektrostatik çekimler oluşacak ve bu da proteinlerin çökmesi ile sonuçlanacaktır.
İzoelektrik çöktürme genellikle istenen proteinden çok istenmeyen proteinleri çöktürmek için kullanılır, çünkü çöktürme sırasında denatürasyon ve aktivite kaybı meydana gelebilir. Bunun nedeni ise elektrostatik çekimler nedeni ile proteinin üç boyutlu yapısının bozulmasıdır.
2- İyonik Şiddeti Düşürerek Çöktürme
Bazı proteinler çözeltinin iyonik şiddetinin belirli bir değerin altına düşürülmesi ile çöktürülebilir. Bu nadiren uygulanan bir yöntem, ham ekstratların kullanılma durumlarında gerçekleştirilebilir. İyonik kuvvet sadece su ilavesi ile düşürülebilir. Böylece konsantrasyon azalırken genelde çözünürlük artmış olur. Düşük iyonik şiddet ile çöktürme işleminin gerçekleşmesi izoelektrik noktada ya da izoelektronik nokta civarında daha olasıdır.
3- İyonik Şiddeti Artırarak Çöktürme (Salting-out)
Nötral tuzların ortama giderek artan miktarda eklenmesi ile çöktürme, kullanılan en yaygın yöntemdir. Çöken protein genellikle denatüre olamamaktadır ve aktivitesi de pelletin yeniden çözülmesi ile birlikte ortaya çıkmaktadır. Ek olarak bu tuzlar proteinleri denatürasyona, proteolizize, ya da bakteriyel kontaminasyona karşı stabilize edebilirler. Bu nedenle “salting-out” aşaması, ekstratın bir gece boyunca saklanması için en uygun aşamadır. Burada çökmenin sebebi izoelektrik çökmenin sebebinden farklıdır ve bu nedenle bu iki yöntem aşamalı saflaştırmalar için sıra ile uygulanır. Salting-out protein yüzeyinin hidrofobik yapısına bağlıdır. Suyu sevmeyen gruplar genellikle proteinin iç kısmında bulunurlar ancak bazıları parçalar halinde protein yüzeyinde yer alırlar. Su molekülleri bu gruplar ile temasa zorlanır ve bunu gerçekleştirirken düzenli hale gelir. Sisteme tuzlar eklendiğinde su, tuz iyonlarını çözer ve tuz derişimi arttıkça su proteininin çevresinden ayrılarak hidrofobik parçaları açıkta bırakır. Bir protein üzerindeki bu hidrofobik parçalar diğer bir protein üzerindeki hidrofobik parçalar ile etkileşebilir ki bu da yığışım olayıyla sonuçlanır. Bu nedenle daha büyük ya da daha fazla hidrofobik bölgeler bulunduran proteinlere göre daha önce agrege olacak ve çökeceklerdir. Oluşan agregatlar genellikle birkaç proteinin karışımıdır. İzoelektrik çöktürmede olduğu gibi ekstratın yapısı ilgilenilen proteinin çökmesi için gerekli olan tuz konsantrasyonunu etkileyecektir. İzoelektrik çöktürmede olanın aksine, sıcaklığın yükseltilmesi, çökmenin miktarını arttırmaktadır. Ancak ” salting-out” genellikle aktivite kaybını azaltmak için 4 ° C ‘de gerçekleşir. Tuz olarak genellikle amonyum sülfat kullanılır.
Tuzun etkinliği genel olarak anyonun türüne bağlı olarak belirlenmektedir. Yükü fazla olan anyonlar en etkili olanlardır. Eski sıralanışı fosfat>sülfat>asetat>klorür şeklindedir. Fosfat sülfattan daha etkili olduğu halde pratikte nötral pH’ta fosfat genel olarak en etkili hali olan PO4-3 den daha çok HPO4-2 ve H2PO4- iyonları olarak bulunduğundan amonyum sülfat daha çok tercih edilmektedir. Tek değerlikli katyonlar en etkili katyonlardır. Etki sıralanışı NH4+>K+>Na+ şeklindedir. Tuzun az miktarda safsızlık içermesi kullanımda önemli hata oluşturmaz, ve miktarda fazla kullanıldığında fiyatı ucuz olmalıdır. Birkaç molarlık konsantrasyonlar gerektiğinden tuzun çözünürlüğü de önemlidir. Bu nedenle birçok potasyum tuzu uygun görülmemektedir. Olası denatürasyon riski ya da çözünürlükte değişmeler sebebiyle, tuzun çözünmesi esnasında sıcaklık yükselmesi az olmalıdır. Son olarak, oluşan son çözeltinin yoğunluğu önem taşımaktadır. Çünkü agregat ve çözelti arasındaki yoğunluk farkı santrifüj ile ayırmada önemlidir.
4- Organik Çözücüler ile Çöktürme
Pek çok protein, aseton veya etanol gibi su ile karışabilen organik çözücülerin eklenmesi yoluyla çöktürülebilir. Burada proteinin çökme davranışı geliştiren faktörler izoelektrik çöktürmedekilere benzerdir ve salting-out etkisi ile çöktürmede olduğundan farklıdır. Bu nedenle,bu yöntem bir saflaştırma prosesinde izoelektrik çöktürmeye alternatif olarak ya da salting-out ile birleştirilerek kullanılabilir. Organik çözücünün ilavesi çözeltinin dialektrik sabitini ve dolayısıyla çözme kuvvetini düşürmektedir. Böylece proteinin çözünürlüğü azaltılmış olur ve elektrostatik çekimler etkisi ile agregasyon meydana gelebilir. Çökme pH değeri proteinin pI değerine yakın olunca daha kolay bir şekilde meydana gelmektedir. Proteinin boyutu da çökme davranışını geliştirmektedir.Buna göre daha büyük proteinler diğer özellikleri aynı olan daha küçük proteinlere göre daha düşük organik çözücü konsantrasyonlarında çökeceklerdir. Bununla birlikte bazı hidrofobik proteinler, özellikle hücre membranlarında bulunanlar organik çözücüler etkisi ile çöktürülemezler, ve aslında membranlardan organik çözücü proteinin hidrofobik parçaları etrafındaki su moleküllerinin yerini alacaktır, ki bu da çözünürlüğün artması ile sonuçlanacaktır.
Denatürasyonu minimuma indirmek için organik çözücülerle çöktürme işlemi 0°C’de veya altındaki sıcaklıklarda gerçekleştirilmelidir. Daha yüksek sıcaklıklarda protein konformasyonu hızlı bir şekilde değişecektir. Bu da organik çözücü moleküllerinin proteinin iç kısmına erişmesine olanak sağlayacaktır. Burada bu moleküller hidrofobik etkileşimleri bozabilir ve denatürasyona sebep olabilirler. Organik çözücülerin sulu çözeltilerle karışımlarının donma noktasının 0°C’nin altında olması bu çöktürme işleminin uygulanabilirliği açısından şanstır.
Aseton ve etanol en çok kullanılan çözücülerdir; kullanılan diğer çözücüler metanol, propan-1-ol ve propan-2-ol’dür. Özellikle büyük ölçeklerde çalışırken güvenlik dikkate alınmalıdır; buna göre çözücü göreceli olarak toksik olmamalı ve görece olarak yüksek parlama noktasına sahip olmalıdır.
5- Organik Polimerler ile Çöktürme
PEG(polietilen glikol) en çok kullanılan organik polimerdir. Çöktürme mekanizması organik çözücülerle çöktürme mekanizması ile benzerdir. Bununla birlikte daha düşük konsantrasyonlar gerektirmektedir, genellikle %20’den daha düşük. Daha yüksek konsantrasyonlar viskoz çözelti oluşumu ile sonuçlanmaktadır. Bu da çökeltinin geri kazanılmasını zorlaştırmaktadır. Polimerin molekül ağırlığı 4000’den daha büyük olmalıdır.
6- Denatürasyon ile Çöktürme
Denatürasyon ile çöktürme eğer ilgilenilen protein muamele sonrasında denatüre olmuyorsa, buna karşılık kontamine edici proteinler denatüre oluyorsa, bir saflaştırma adımı olarak kullanılabilir. Denatürasyon, sıcaklığın, pH’ın değiştirilmesi ya da organik çözücülerin eklenmesi ile gerçekleştirilebilir. Proteinlerin tersiyer yapısı denatürasyon esnasında bozulur. Bunun sonucunda rastgele sarmal yapılar oluşur. Çözelti içerisinde bu sarmallar birbirlerine dolaşırlar ve böylece agregatlar oluştururlar. Agregat oluşumu pH ve iyonik şiddet ile geliştirilebilir. Daha çok düşük iyonik şiddette ve proteinin izoelektrik noktası civarlarında gerçekleşir.
Yüksek sıcaklık ile denatürasyon: Yüksek sıcaklıklar, proteindeki konformasyonu sağlayan bağları kırarak ve birleşmiş çözücü moleküllerinin serbest kalmasını sağlayarak gerçekleştirmektedir. Farklı proteinler için denatürasyon sıcaklığı da farklıdır.
pH ile denatürasyon: Aşırı pH iç kısımlarda elektrostatik itmeye neden olmaktadır ya da amino asit yan zincirindeki yükleri değiştirerek iç kısımlardaki elektrostatik çekme kuvvetlerini yok etmektedir. Bunun sonucunda protein açılır. Ve bağlanmış çözücü molekülleri uzaklaşır. Bu da denatürasyon ile sonuçlanır.
Organik çözücü ile denatürasyon: Organik çözücüler ile seçici denatürasyon, denatürasyonu arttırmak için, genellikle 20-30 °C’lerde gerçekleştirilir.
proteinlerin çöktürme özellikleri proteinleri çöktürme deneyleri,protein saflaştırılması.sütten ve etten protein eldesi protein çöktürme yöntemleri salting out tuz ile protein çöktürme
18 Ekim 2014 Cumartesi
Protein Mühendisliği Uygulamaları
.jpg)
Bir protein mühendisliği uygulamasında amaç;
1.
•Yüksek
öneme sahip kimyasalların üretimini katalizleyecek üstün özelliklere
sahip enzimlerin üretimi;
2.
•Yüksek
miktarda enzim üretimi
•Üstün
özelliklere sahip biyolojik bileşiklerin( sentetik peptidler, sentetik
ilaçlar v.s) üretilmesi şeklinde olabilmektedir.
•
Bir proteinde ne gibi özelliklerin değiştirilmesi amaçlanabilir?
Vmax değerinin artırılması
Bir proteinde ne gibi özelliklerin değiştirilmesi amaçlanabilir?
Vmax değerinin artırılması
•
Km
değerinin düşürülmesi
•
Bir
inhibisyon merkezinin eliminasyonu
•
pH
optimumun değiştirilmesi
•
Reaksiyon
spesifikliğinin değiştirilmesi
•
Kararsızlığa
neden olan artıkların eliminasyonu
•
Termal
kararlılığın artırılması
•
Organik
çözücülerde kararlılığın artırılması
•
Fizikokimyasal
özelliklerinde değişmeler
•
Ligand
bağlama spesifikliğin modifikasyonu
•
Kimerik
ve çok fonksiyonlu proteinler
•
Saflaştırma
için etiket eklenmesi
•
Terapötik
ajanların etkinliğinin artırılması
Protein Mühendisliği Yöntemleri
Protein mühendisliği çalışmalarında sıklıkla karşımıza çıkan iki genel yöntem ‘’rasyonel dizayn’’ ve ‘’yönlendirilmiş evrim’’ dir.
Bu iki yöntem dışında proteinlerin kimyasal ve biyolojik
modifikasyonlarından da söz edilebilir.
Kimyasal modifikasyon
Proteinlerin kimyasal
modifikasyonu yan zincirdeki fonksiyonel
gruplar, N ve C terminal üzerinden kovalent bağ oluşumu ve peptid bağının
parçalanmasıdır.
Bu bağlamda genel olarak proteinlerin
çapraz bağlanması, kovalent immobilizasyonu ve yan grupların spesifik olarak
modifikasyonu ya da işaretlenmesi söz konusu olabilir.
-
Bifonksiyonel
çapraz bağlayıcılar(formaldehid,glutarladehid gibi) ile çapraz bağlama
-Sefaroz
gibi polimer karakterdeki taşıyıcılar ile kovalent immobilizasyon,
-
Arg, Asp, Glu, His, Lys, Trp, Cys ve Met
artıklarının spesifik reaktifler kullanılarak seçimli bir şekilde modifiye
edilmesi,
-
Proteinlerin izlenmesi ve araştırılması amacıyla yan
grupların spesifik olarak etiketlenmesi çalışmaları;
1) Floresans etiketleme
2) Spin etiketleme
3) Afinite etiketleme ve
4) Fotoafinite etiketleme
Biyolojik modifikasyonlar
insan genomunda 500 protein kinaz, 150 fosfoprotein fosfataz, 500 proteaz, >100 ubikitinleyici ligaz ve >50 deubiktinleyici enzim bulunmakatadır. Yaklaşık olarak 1000 ila 2000 civarında genin posttranslasyonel modifikasyonlarda yer alan enzimleri kodladığı düşünülmektedir.
Protein yan zincirinin proteolizi,
fosforilasyon, metilasyon, asetilasyon, glikozilasyon, prenilasyon gibi
modifikasyonlar sonucu protein
çeşitliliği artırılabilmektedir.
Rasyonel Dizayn
Rasyonel Dizayn
Rasyonel dizayn, protein dizisinde önceden tasarlanmış bir değişikliğin bölge
yönlendirilmiş mutagenez ile gerçekleştirilmesidir.
Rasyonel dizayn çalışmalarında nokta
mutasyonu, insertion ve deletion gibi birtakım mutasyonların
gerçekleştirilebilmesi için sıklıkla kullanılan yöntem
Overlap
Extension PCR.
Enzimin yapı-fonksiyon ilişkisi ve
stabilitesine etki eden faktörler henüz tam olarak aydınlatılabilmiş olmaması
ve spesifik bir mutasyonun enzim 3D yapısına ve
karakterine ne şekilde etki edeceğini tahmin etmenin oldukça zor olması
yöntemin en önemli dezavantajı olarak kabul edilir.
Yönlendirilmiş Evrim
Yönlendirilmiş evrim çalışmalarında
modifiye protein elde etmek amacıyla rasgele mutagenez( random mutagenesis) teknikleri
kullanılır. Bir yönlendirilmiş evrim çalışması genel hatlarıyla şu dört
basamaktan oluşur;
1) Modifiye edilmek istenen proteine ait gen
dizisi seçilir ve mutagenez yöntemleri ile dizi çeşitliliği oluşturulur.
2) mutant DNA dizileri bir taşıyıcıya
bağlanır(ligation) ve konukçu hücreye
transformasyonu ardından protein expresyonu induklenir.
3) istenen kabiliyet ya da özelliklere sahip
transformantların seçimi için bir tarama prosedürünün yürütülmesi.
4) Seçilen dizinin çoğaltılması sonrası, arzu
edilirse, mutagenez ve tarama işlemleri birkaç kez tekrarlanarak daha ideal bir
sonuç elde edilebilir. Genellikle altı
döngülü bir çalışmada arzu edilen özelliklere sahip bir protein elde edilebilir.
RASGELE MUTAGENEZ İLE GENETİK ÇEŞİTLİLİK OLUŞTURMA METODLARI
1) Kimyasal
Mutagenez: Etil
MetanSulfonat(EMS), Nitröz asit(HNO2)
gibi mutajenik ajanların kullanılması ile DNA dizisinde birtakım
mutasyonların gerçekleştirilmesi yöntemidir.
Spesifik bazı kimyasalların kullanılması ile spesifik mutasyonlar elde
etmek mümkündür. Örneğin , EMS ile sadece G bazının yanlış kodlanması
sağlanabilirken, nitröz asit ile A/T den G/C e ya da tam tersi bir mutasyon
elde edilebilir. Ayrıca EMS gibi bazı kimyasallar hem in vivo ve hem de in vitro
uygulamalara olanak tanımaktadır.
Basit uygulama ve ekonomik nedenler yöntemin avantajı olarak görülmekle
birlikte , mutasyon derecesinin kontrol edilememesi ve sınırlı düzeyde a.a sübstitisyonuna olanak sağlaması en önemli
dezavantajı olarak görülebilir.
2) Mutator
Strains: rasgele nokta mutasyonlarının oluşturulması amacıyla DNA tamir
mekanizmasından yoksun suşların kullanıldığı yöntemdir. Örneğin bir E. Coli
varyantı olan Epicurian coli XLI-Red DNA
tamir yolaklarındaki eksiklikten ötürü
normal suşlara göre 5000 kat mutasyon
oranına sahiptir.
İlgili proteini kodlayan geni taşıyan bir
plazmid konukçu mutator suşa transforme edilir. Konukçu suşun üremesi ile
birlikte mutant genler doğal olarak kendiliğinden oluşur ve izole edilen
plazmidlere ekstra bir ligasyon basamağının uygulanmasına gerek duyulmaz.
Ayrıca bu yöntem kullanılarak nokta mutasyonları, delesyonlar ve çerçeve
kayması şeklinde mutasyonlar elde edilebilir.
Yöntemin en önemli dezavantajı suşun kendi
genomunda birtakım mutasyonları biriktirmesinden ötürü zayıf düşmeye
başlamasıdır. Bir diğer dezavantaj ise mutasyon sıklığının kb başına 0.5 gibi
düşük bir değerde seyretmesi ve 24 h inkubasyonun zorunlu olmasıdır.
3) ‘’Error-Prone’’ PCR : bu yöntemde Taq Polimerazın hata yapma sıklığının yüksek olmasından ( kb
başına 0,08-0,1) yararlanılır. Bazı PCR
koşullarının değiştirilmesi ile bu oran daha da yukarı çekilebilir. Bu koşullar;
-
baz eşleşme spesifikliği düşürmek amacı ile Mn 2+ iyonlarının eklenmesi;
- dNTP stokiyometrisinin bozulması,
- uyumsuz baz eşleşmelerini stabilize
etmek için Mg2+ konsantrasyonunun artırılması ve
- zincir sonunda eşleşmemiş baz sentezi
için polimeraz konsantrasyonunun artırılması
şeklindedir.
4) Rolling
Circle Error-Prone PCR : ilgili proteini kodlayan genin bir plazmide
bağlanması ve dairesel DNA nın çoğaltılması ile farklı uzunluklarda lineer DNA
parçalarının elde edilmesi yöntemidir.
6)DNA Shuffling: Bazı proteinler geniş gen aileleri tarafından
kodlanırlar. Bu gen ilişkileri sayesinde farklı genlerin restriksiyon
endonukeazlarla kesilip rasgele bir düzen içinde yeniden birleşmeşeri ile yeni
ve üstün özelliklere sahip proteinlerin oluşturulması hedeflenir.
Protein Mühendisliği Uygulamaları
Fersht ve ark. İndole-3-glycerol phosphate synthase(IGPS) ‘den yola çıkarak phosphoribosylanthranylate isomerase(PRAI) elde etmişlerdir. Yönlendirilmiş evrimin bu çarpıcı uygulaması aynı zamanda enzim evriminde ‘conserved scaffold’ hipotezinin de test edilmesini sağlamıştır.
Reetz ve ark. Pseudomonas aeruginosa’dan elde edilen bir lipazın
2-metildekanoata enantio seçiciliğini yönlendirilmiş evrim tekniğini kullanarak
artırmayı başarmışlardır. Mutant kütüphanesinin taranmasında saf(R)- ya da (S)-p-nitrofenil ester
kullanmışlardır. Mutant enzimde aktif merkez dışındaki beş a.asidin yer
değiştirdiği ve böylece aktif merkez dışındaki loopların flexibilitesinin
enantioseçiciliğe katkıda bulunduğu anlaşılmıştır.
Bir enzimin termal stabilitesindeki artışa
aktivite kaybının eşlik edeceği yönündeki yaygın kanıya rağmen, psycrophilic
subtilisin proteazının termal stabilitesi 60 C ye çıkarılmış ve 10 C deki
aktivitesi de korunmuştur. Bu çalışmada psycrophilic ve mesophilic enzimler
arasındaki %30-80 lik amino asit farklılığına karşın mutant enzimin sadece 7
amino asit değişimi içerdiği görülmüştür.(Miyazaki ve ark 2000)
Maxygen(USA) ve Novo Nordisk(Danimarka)
araştırmacıları eşzamanlı olarak
family-shuffled subtilisin kütüphanesinde dört parametre taramış- 23 C de aktivite,
termal stabilite, organik çözgen toleransı ve
pH profili- herbir parametre için
dikkate değer iyileşmeler gözlemlemişlerdir.
Rasyonel protein dizaynına ilişkin örnekler
ise ;
-alfa amilazın termal stabilitesini artırmak
için asparagin artıklarının uzaklaştırılması, rijid karaktere sahip prolin
artığının eklenmesi ,
- Lizozimin termal stabilitesini artrmak için
disülfid köprülerinin eklenmesi,
-3-izopropil malat dehidrogenazın termal
stabilitesini artırmak için hidrofobik
çekirdeğin güçlendirilmesi,
- Format dehidrogenazın oksidasyon
stabilitesini artırmak için Met ve Cys artıklarının uzaklaştırılması ise olumlu
sonuçlar vermiştir.
SDM ile rasyonel protein dizaynına güzel
bir örnek de tirozin fenol liyaz enziminin SDM ile dikarboksilik amino asit
beta liyaz aktivitesi göstermesi örneğidir. Sözkonusu enzim doğada bulunmayan
bir enzimdir ve rasyonel protein dizaynı ile yeni enzimlerin üretilmesi yönünde
oldukça hoş bir örnek oluşturmaktadır.(Christen P. 1999)
Rasyonel Dizayn ve Yönlendirilmiş
Evrimin Kombinasyonu
Novo Nordisk araştırmacıları Coprinus
cinereus’tan elde ettikleri hem peroksidaz
enzimi üzerinde yürüttükleri bir çalışmada her iki yöntemi kullanmışlar
ve epPCR ile 64000 mutant üzerinde yaptıkları tarama çalışması ve moleküler
modelleme çalışmaları sonucu kritik amino asidin Glu239 olduğunu tespit
etmişler ve saturation mutagenesis ile
Glu239Gly mutantı en iyi sonucu vermiş ve takip eden in vivo shuffling
denemesi sonucu elde edilen mutantın termal stabiltesinde 174 katlık artış ve
oksidatif stablitesinde ise 100 katlık bir artış elde edilmiştir.(Nat.
Biotechnology 1999)
Her iki yöntemin başarılı kombinasyonuna
ilişkin bir diğer örnek ise, Bacillus subtilisten elde edilen 3-izopropil malat
dehidrogenaz enzimin termal stabilitesini artırmaya yönelik olarak yapılan
çalışmadır. Bu çalışmada SDM ile üçlü mutasyon elde edilmiş ve ardından epPCR
kullanılarak termal stabilitenin daha da arttığı ve bu duruma üçlü mutasyona
ilaveten epPCR’da ikili bir mutasyonun yol açtğı saptanmıştır. Sonraki iki
mutasyon da daha sonra SDM ile kombine edilmiştir. (Oshima T. 1999)
KAYNAKLAR
Protein Mühendisliği,2007, Azmi Telefoncu,Figen Zihnioğlu,İrfan Küfrevioğlu,Ali Kılınç
Nikolas E.
Labrou; Current Protein and Peptide Science;2010
Uwe t
Bornscheuer; Martina Pohl; Current Opinion in Chemical Biology;2001
M.
Hedhammor; T. Gröslund; S. Hober; Chem. Eng. Tech. ; 2005
Karla L.
Ewalt; Paul Schimmel; Mc Graw Hill Comp.;2007
Bu bilgiler Ege Üniversitesi Biyokimya Bölümü mezunu Filiz Taşcı tarafından sitemize gönderilmiştir.Sizlerde yayınlanmasını istediğiniz yazılarınızı biyokimyagentr@gmail.com adresine gönderebilirsiniz.
Sütten Kazein Eldesi Deneyi

Süt tozundan kazein eldesi
DENEYİN ADI: Süt tozundan kazein eldesi
DENEYİN AMACI: Süt tozundan kazein eldesi ve kuru süt tozundaki kazein yüzdesinin hesaplanması
TARiH:07.03.2008
TEORİK BİLGİ:
Süt tozu; ham sütteki suyun tamamına yakını buharlaştırıldıktan sonra, yoğunlaşmış kuru maddenin toz haline getirilmesi ile elde edilen dayanıklı ve besin değeri çok üstün bir süt mamulüdür. Süt tozu protein olarak bilinen kazein, şeker olarak bilinen laktoz, albümin proteini ve bazı gliseridler (tereyağı) içerir.
Kazein, genel olarak süt proteini olarak bilinir. Böyle denmesinin sebebi, sadece sütte bulunması ve sütün en büyük protein kısmını oluşturmasından ileri gelir. Sütün içerisinde yüzlerce protein olmasına rağmen, kazein yüzde 80 gibi bir paya sahiptir. Kazein, süt içerisinde fosfoprotein yapısındaki bir kalsiyum tuzu olarak karşımıza çıkar.
Yapısında, çokça etkileşime girmemiş prolin peptitleri vardır. Ayrıca kazein yapısında disülfit bağlarının olmaması sonucu, ikincil ve üçüncül protein yapısı küçüktür. Bu yüzden de denatüre olamaz.
Kazein saf bir protein olmayıp alfa, beta, gama kazein diye adlandırılan birbirine benzeyen en az üç protein bileşeninden oluştuğu elektroforezle gösterilmiştir.
Kazein, sıcaklık ile pıhtılaşmayan bir yapıya sahiptir. Kazeinin çökmesi ortam ph ‘sına bağlıdır. Asitide yükseldikçe kazeini çöktürmek için gereken sıcaklık da düşer. Isıtmakla asidite de kendiliğinden artar.
Kazein, asetik asit (sirke) gibi yaygın asitlerin eklenmesi ile ph’sının düşürülmesi yöntemiyle ve ineklerin midelerinden elde edilerek peynir yapımında kullanılan rennet enzimiyle pıhtılaştırılabilir.
İlk işlemin mekanizması şu şekilde açıklanabilir: kesilmiş süt proteini olan kazein, misel olarak adlandırılan bir demete bağlanmış birçok bileşik içerir. bir protein alt ünitesi her bir miseli stabilize ederek, süt içerisinde dağılmış halde kalmasını sağlar. Asitleşmede, koruyucu protein alt üniteleri dengesizleşir ve misellerle birlikte pıhtılaşabilir, bu da sütü kesilmiş/pıhtılaşmış yapar. Kimyasal olarak, kazein miseli stabilize değildir ve bundan dolayı, izoelektrik noktadaki izoelektrik yükteki düşüş ile kümeleşme gerçekleşir. Bu esnada, ortamın asitliği minerallerin çözünürlüğünü artırır, böylece misel yapıda bulunan organik kalsiyumun ve fosforun büyük kısmı sıvı fazda çözünür duruma gelir. Kazein miselleri parçalanır ve küme oluşumu ile kazein çöker.
Kazein sütten asit ilavesi ile izoelektrik noktası ph:4,6’da veya süt kendi kendine ekşidiği zaman da kazein yavaş yavaş çöker. Kazein sütten asitle izoelektrik noktaya ulaşınca çökerken, rennin ilavesiyle kazein izoelektrik noktaya varmadan nötral (ph = 7) noktada parakazein durumunda çöker.
Kazein, hidrofobik bir yapıya sahiptir. Bu yüzden kazein miselleri, sütte bir süspansiyon halinde bulunurlar. Hidrofobik olması, kazeinin suda ve nötral tuz çözeltilerinde çözünmemesine, sodyum oksalat ve sodyum asetat gibi tuz çözeltilerinde ve bazik çözeltilerde ise çözünmesine sebep olur.
Yapısında, çokça etkileşime girmemiş prolin peptitleri vardır. Ayrıca kazein yapısında disülfit bağlarının olmaması sonucu, ikincil ve üçüncül protein yapısı küçüktür. Bu yüzden de denatüre olamaz.
Kazein saf bir protein olmayıp alfa, beta, gama kazein diye adlandırılan birbirine benzeyen en az üç protein bileşeninden oluştuğu elektroforezle gösterilmiştir.
Kazein, sıcaklık ile pıhtılaşmayan bir yapıya sahiptir. Kazeinin çökmesi ortam ph ‘sına bağlıdır. Asitide yükseldikçe kazeini çöktürmek için gereken sıcaklık da düşer. Isıtmakla asidite de kendiliğinden artar.
Kazein, asetik asit (sirke) gibi yaygın asitlerin eklenmesi ile ph’sının düşürülmesi yöntemiyle ve ineklerin midelerinden elde edilerek peynir yapımında kullanılan rennet enzimiyle pıhtılaştırılabilir.
İlk işlemin mekanizması şu şekilde açıklanabilir: kesilmiş süt proteini olan kazein, misel olarak adlandırılan bir demete bağlanmış birçok bileşik içerir. bir protein alt ünitesi her bir miseli stabilize ederek, süt içerisinde dağılmış halde kalmasını sağlar. Asitleşmede, koruyucu protein alt üniteleri dengesizleşir ve misellerle birlikte pıhtılaşabilir, bu da sütü kesilmiş/pıhtılaşmış yapar. Kimyasal olarak, kazein miseli stabilize değildir ve bundan dolayı, izoelektrik noktadaki izoelektrik yükteki düşüş ile kümeleşme gerçekleşir. Bu esnada, ortamın asitliği minerallerin çözünürlüğünü artırır, böylece misel yapıda bulunan organik kalsiyumun ve fosforun büyük kısmı sıvı fazda çözünür duruma gelir. Kazein miselleri parçalanır ve küme oluşumu ile kazein çöker.
Kazein sütten asit ilavesi ile izoelektrik noktası ph:4,6’da veya süt kendi kendine ekşidiği zaman da kazein yavaş yavaş çöker. Kazein sütten asitle izoelektrik noktaya ulaşınca çökerken, rennin ilavesiyle kazein izoelektrik noktaya varmadan nötral (ph = 7) noktada parakazein durumunda çöker.
Kazein, hidrofobik bir yapıya sahiptir. Bu yüzden kazein miselleri, sütte bir süspansiyon halinde bulunurlar. Hidrofobik olması, kazeinin suda ve nötral tuz çözeltilerinde çözünmemesine, sodyum oksalat ve sodyum asetat gibi tuz çözeltilerinde ve bazik çözeltilerde ise çözünmesine sebep olur.
VERİLER:
Süt tozu: 20 gr.
Süzgeç kağıdı: 3,1 gr.
Süzgeç kağıdı + kazein: 13,3 gr.
Kazein: 10,2 gr.
YORUM:
20 gr. süt tozu kullanılarak 50ml çözelti hazırlandı. Su banyosunda 40C ‘ye kadar ısıtılmış süt çözeltisi üzerine yavaş yavaş 20ml % 10luk asetik asit çözeltisi ilave edildi. Ve yavaş yavaş karıştırıldı. Bu işlemi yavaş yapmamızın sebebi büyük miktarda sakızımsı kazein kütlesi elde etmektir. Eğer işlemi hızlı yaparsak kazein küçük partiküller halinde oluşur. Bu da sütten zorlukla ayrılır.
Kazein, sıcaklık ile pıhtılaşmayan bir yapıya sahiptir. Kazeinin çökmesi ortam ph ‘sına bağlıdır. Asitide yükseldikçe kazeini çöktürmek için gereken sıcaklık da düşer. Isıtmakla asidite de kendiliğinden artar. Süt çözeltisi üzerine eklenen asit çözeltisi ve su banyosu bu işlemleri gerçekleştirmemizi sağladı.
Kazein, misel olarak adlandırılan bir demete bağlanmış birçok bileşik içerir. Asetik asit ilavesi bu misellerdeki negatif yükleri nötürleştirir. Serbest protein oluşmasına neden olur. Ve kazeinin çökmesine yardımcı olur.
Sütün içerisinde yüzlerce protein olmasına rağmen, kazein yüzde 80 gibi bir paya sahiptir. Bizim deneysel sonucumuza göre 20 gr süt tozundan 10,2 gr kazein elde edildi. Buda % 51 demektir. Deneyimiz başarıyla sonuçlanmıştır.
sütten kazein elde etmek proteinlerin çeşitlilikleri süt tozundan kazein elde etme yumurtadan kazein elde etme enzimler deneyi biyokimya laboratuvarı 3 deneyi ege üniversitesi dumlupınar üniversitesi sütten kazein nasıl elde edilir sonuç raporu deneyi hazırlık raporu
Aminoasit Titrasyonu Deneyi

Doğadaki sayının fazlalığına rağmen,organizmadaki proteinlerin yapısına katılan sadece 20 aminoasit bulunmaktadır.
Çeşitli insan proteinlerinin hepsinin primer yapıları genetik kod tarafından belirlenmiş lineer bir sırayla 20 aminoasitten sentezlenerek düzenlenir.Bunlar,DNA tarafından kodlanabilen aminoasitlerdir.
Proteinlerde bulunan 20 standart aminoasitin hepsi de a-amino asittir.
Bu isimlendirmenin nedeni,aminoasitlerde amino grubunun a -karbon atomuna bağlanmış olmasıdır. a -karbon atomu,karboksil grubundan sonraki ilk karbon atomuna verilen addır.
Aminoasitlerin genel yapısı
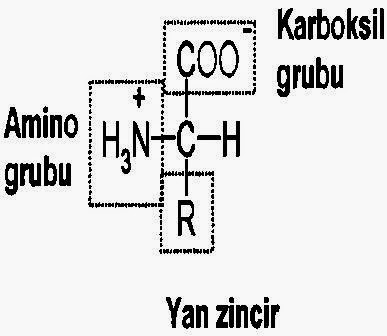
Protein sentezinde kullanılan aminoasitlerin her biri aynı genel yapıya sahiptir.Bunlar,bir karboksilik asit grubu,amino grubu,hidrojen atomu ve R grubu olarak adlandırılan ve her amino asit için farklı olan grup.
4 farklı grupla bağ yapan bu karbon atomu asimetrik karbon atomu olarak adlandırılır. Asimetrik karbonlar kiral merkezler olarak adlandırılır.
Glisin dışındaki tüm aminoasitlerde a -karbon atomu 4 farklı grupla bağ yapar,glisinde R grubu bir diğer hidrojen atomudur.
Asimetrik karbon atomuna sahip aminoasitler optikçe aktiftir,yani düzlemsel polarize ışığı çevirirler.Dört farklı grubun -karbon atomu çevresinde tetrahedral konuşlanışı amino asitlere optik etkinlik kazandırmaktadır.
Polarize ışığı sağa veya sola çevirmelerine göre aminoasitler L(levorotator) ve D(dextrorotator) olarak sınıflandırılmalarına rağmen,3 karbonlu şeker olan gliseraldehit örnek alınarak yapılan D L sisteminde,L-gliseraldehitle konfigürasyon benzerliği olanlar L-amino asit olarak adlandırılmıştır.
Bu nedenle,proteinlerde bulunan amino asitelerin bazıları polarize ışığı sağa veya sola çevirmelerine karşın hepsi L-gliseraldehitin mutlak konuşuna sahiptir,yani L- a -aminoaistlerdir.
D-aminoasit kalıntıları ise,bazı peptit antibiyotiklerde,bakteri hücre duvarında bulunabilir.
RS Sistemi
Birden fazla kiral merkez içeren bileşikler için RS sistemi terminolojisi daha yararlıdır.
Kiral atomu en düşük önceliğe sahip grup,en uzak noktada kalacak şekilde gözlemlenir.Eğer diğer 3 grubun önceliği saat yönü dizilişinde azalıyorsa,konfigürasyon R(rectus,sağ), saat yönünün tersine bir diziliş varsa konfigürasyon S(sinister,sol) olarak adlandırılır.
Bu sistemlerin amacı,asimetrik karbon atomunun 4 bağlantısının mutlak(bağıl) şekli için özel bir bilimsel sınıflandırma yapılmasıdır.
Bir tetrahedral karbon atomuna bağlı 4 farklı yer değiştiren grup uzayda,benzer veya aynı kimyasal özellikleri olan,ancak belirli fizyolojik ve biyolojik özellikleri farklılaşan iki stereoizomere yol açarak iki farklı şekilde düzenlenebilir.
Bir karbon atomu 4 farklı yer değiştiren gruba sahipse,ayna görüntüsü birbiri ile çakışmayan iki formda düzenlenebilir.Buna enantiyomer denir.
Birbirinin ayna görüntüsü olmayan stereoizomer çiftleri diyastomer olarak adlandırılır
Proteinlerde bu amino asitler,bir amino asitin karboksilik asit grubuyla sonraki aminoasitin amino grubu arasında oluşan peptit bağlarıyla,polipeptit zincirleri denen lineer polimerler oluşturmak üzere birleşir.
Amino asitlerin sınıflandırılması
Amino asitlerde bulunan R değişken grubunun kimyasal özellikleri bağ tiplerini ve bir polipeptit zincirindeki her bir amino asitin diğer moleküllerle olabilecek etkileşimlerini belirler.
Proteinlerdeki amino asitler,a-karbon atomlarına bağlı R gruplarının polar olup olmadığı temeline göre iki geniş gruba ayrılabilir.
* Polar(hidrofilik aminoasitler):
-su ile hidrojen bağları oluşturabilirler.
-bu nedenle proteinlerin su ile temas eden dış yüzünde bulunma eğilimindedirler.
* Nonpolar(hidrofobik)aminoasitler ise;
Su ile hidrojen bağı oluşturamazlar, proteinlerin iç yüzünde bulunurlar.
R gruplarının pozitif veya negatif yüklü olmasına göre,aminoasitler asidik veya bazik olarak da sınıflandırılırlar.Buna göre;
İkinci bir amino grubu taşıyan lizin,pozitif yüklü guanidin grubu taşıyan arjinin ve imidazol grubu taşıyan histidin pH:7’de pozitif yüklü R-grubu taşıyan aminoasitlerdir.
Buna karşılık,ikinci bir karboksil grubuna sahip aspartat ve glutamat,pH:7’de negatif net yüke sahiptir yani asidik aminoasitlerdir.
Alifatik amino asitler
Alifatik amino asitler,yan zincirlerinde(R) heteroatom(O,N,S) taşımayan ve halka yapısı göstermeyen aminoasitlerdir??
Bunlar:glisin,alanin,valine,lösin ve isolösindir.
Aromatik Amino Asitler
Aromatik halka,üç konjuge çift bağlı altı üyeli karbon-hidrojen halkasıdır.
Aromatik halkaya sahip amino asitler;
*Fenilalanin(benzen halkası),
*Tirozin(fenol grubu),
*Triptofan(indol halkası),
*Histidin(imidazol grubu).
Aromatik amino asitlerin ortak özelliği,
240-270nm dalga boyundaki UV ışığı absorbe etmeleridir.
Triptofan,en kuvvetli absorblama kapasitesine sahiptir.
Hidroksil grubu içeren aminoasitler
Serin
Treonin
Tirozin
*Her hangi bir bileşik hidroksil grubu içeriyorsa,o bileşik polardır.Bunlar su ile hidrojen bağı oluşturabildikleri için proteinlerin suyla temas eden dış yüzünde bulunma eğilimindedirler.
Sülfür içeren amino asitler
>Sistein:
-sülfidril grubu içerir.Disülfid bağı oluşturur
>Metionin:
-metil grubu içerir.Esansiyel a.a.’tir.
Aminoasitler,amfoterik özelliğe sahiptir, bir başka deyişle çözeltinin H iyon konsantrasyonuna göre asit ya da baz olarak fonksiyon görürler.Bu nitelikleri karbonil gruplarının proton verebilme, buna karşın amino gruplarının proton alabilme yeteneğinden kazanılır.
Her amino asit,kendilerine özgü bir pH noktasında eşit sayıda negatif ve pozitif yüke sahiptir.Amino asitlerin yüksüz formda bulundukları bu pH değerine izoelektrik nokta adı verilir.
pKa değeri,asitlerin ayrışma sabitinin negatif logaritmasıdır.pKa değeri düşük asitler,kuvvetli asitlerdir.
Histidin,sahip olduğu imidazol protonuna ait pK’nın kendisine pH:7’de baz veya asit gibi davranabilme yetisi vermektedir.
Bu nedenle fizyolojik pH’da histidin en güçlü tampon görevi gören aminoasittir.
Hemoglobinin yapısında bulunması bu açıdan önem taşımaktadır.
Asidik ve bazik niteliklerinin yaklaşık olarak eşit olması nedeniyle,nötral aminoasitler sulu çözeltilerinde nötral reaksiyon verirler.Örnek olarak glisinin değişik pH değerli çözeltilerdeki titrasyon eğrisi görülmektedir.
Titrasyon eğrisinin değerlendirilmesinden asidik ve bazik grupların dissosiasyon sabitleri(pK) ve izoelektrik noktaları ortaya konulabilir.
Standart dışı aminoasitler
Bilinen 20 aminoasidin dışında, protein yapısına katılan ve bilinen aminoasitlerin modifikasyonuyla oluşan aminoasitler de vardır.
Bunlardan bazıları;
*4-hidroksiprolin ve 5-hidroksilizin: kollajenin yapısında bulunurlar.
*6-N-metillizin:kasın kontraktil proteini olan miyozinin bileşenidir.
Bir diğer önemli standart dışı aminoasit,
γ-karboksiglutamat’tır.Bu aminoasit kan pıhtılaşma proteini olan protrombinin yapısında ve biyolojik fonksiyon olarak Ca bağlayan proteinlerin yapısında bulunur.
Aminoasitlerin varlığının saptanması ve ayrıştırılması
Ninhidrin reaksiyonu amino asitlerin saptanmasında duyarlılığı ve spesifitesi nedeniyle büyük pratik öneme sahiptir.
Amino asit ninhidrin ile reaksiyona girerse aminoasit 1 C atomu eksik aldehide oksitlenirken,1 mol CO2 ve NH3 serbest kalır.Daha sonra 1 mol ninhidrin,1 mol redükte ninhidrin ve NH3 tekrar reaksiyona girer,mavi menekşe renk oluşur.
Bu kompleksin renginin spektrofotometrik yöntemlerle ölçümü sonucu ortamdaki aminoasit konsantrasyonu belirlenebilir.
Aminoasitleri ayıran çeşitli yöntemler
Kağıt kromatografisi
İnce tabaka kromatografisi
Yüksek performanslı likit kromatografi(HPLC)
İyon değiştirici kromatografi
Jel filtrasyon kromatografi
Yüksek voltajlı elektroforez

aminoasitler, doğal aminoasitler sentetik amino asitler,aminoasitlerin titrasyonu deneyi sonuç raporu hazırlık raporu biyokimya 1 laboratuvarı sivas cumhuriyet üniversitesi biyokimya aminoasitler biyokimya vize soruları
Kaydol:
Kayıtlar (Atom)